← Tous les textes du Grand Oral
MathsSVT
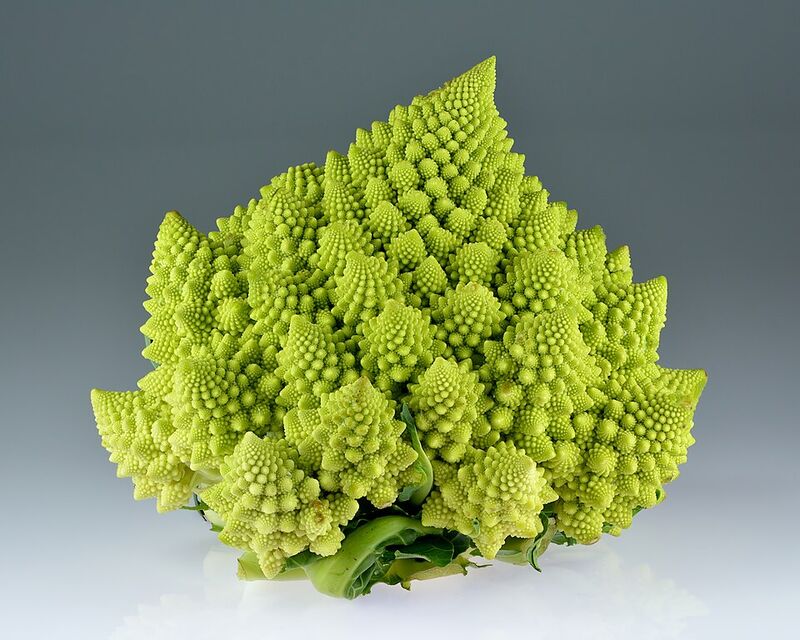
Un chou romanesco est fait de petits choux, eux-mêmes faits de choux plus petits. Une fougère est faite de feuilles qui ressemblent à la fougère entière. Nos bronches se divisent en deux, puis encore en deux, une vingtaine de fois. Ces formes, qui se répètent à des échelles de plus en plus petites, s'appellent des fractales.
Ce texte explique, avec les outils de terminale (suites géométriques, sommes, limites, logarithme, dérivation), pourquoi le vivant est si souvent fractal : une forme fractale permet d'avoir une surface immense ou un réseau très long dans un volume limité. Il rassemble des connaissances ; à chacun d'y choisir une direction et d'y construire sa question.
- Qu'est-ce qu'une fractale ?
- Le flocon de Koch : un périmètre infini autour d'une aire finie
- La dimension fractale
- Les arbres : des branches qui se divisent en deux
- Les poumons : une grande surface dans un petit volume
- Les vaisseaux sanguins et la loi de Murray
- Fougères, romanesco, neurones, intestin
- La loi de Kleiber : la taille et l'énergie
- Les limites du modèle fractal
- Des directions pour construire sa question
Le mot fractale a été inventé en 1975 par Benoît Mandelbrot (1924-2010), à partir du latin fractus, « brisé ». Dans son livre Les objets fractals, il remarque que la géométrie apprise à l'école, faite de droites, de cercles et de sphères, décrit mal les nuages, les montagnes, les côtes ou les arbres. Il propose d'étudier des formes qui ont deux propriétés :
- l'autosimilarité : quand on agrandit un morceau de la forme, on retrouve la forme entière (exactement, ou à peu près) ;
- des détails à toutes les échelles : plus on regarde de près, plus on voit de détails. La forme ne devient jamais lisse, contrairement à un cercle, qui ressemble à une droite quand on zoome dessus.
Les fractales mathématiques sont construites par une infinité d'étapes : on répète la même règle sans fin. C'est pourquoi les suites et les limites sont l'outil naturel pour les étudier. Un premier exemple, le triangle de Sierpinski, est présenté dans le texte Le triangle de Sierpinski. Ici, on part d'un autre exemple, le flocon de Koch, puis on va vers le vivant.
En 1904, le mathématicien suédois Helge von Koch décrit la construction suivante.
- Étape $0$ : on part d'un triangle équilatéral de côté $1$.
- Passage d'une étape à la suivante : on coupe chaque côté en trois morceaux égaux. Sur le morceau du milieu, on construit vers l'extérieur un petit triangle équilatéral, puis on efface ce morceau du milieu. Chaque côté est ainsi remplacé par $4$ côtés, chacun $3$ fois plus court.
Le flocon de Koch est la figure obtenue « à la limite », quand on répète la règle une infinité de fois. Le curseur de la figure ci-dessous montre les premières étapes.
Notons $c_n$ le nombre de côtés à l'étape $n$, $\ell_n$ la longueur d'un côté, et $P_n$ le périmètre.
- Chaque côté est remplacé par $4$ côtés : $c_{n+1} = 4\,c_n$ et $c_0 = 3$, donc $c_n = 3 \times 4^n$.
- Chaque côté est $3$ fois plus court : $\ell_{n+1} = \dfrac{\ell_n}{3}$ et $\ell_0 = 1$, donc $\ell_n = \dfrac{1}{3^n}$.
- Le périmètre est le nombre de côtés multiplié par leur longueur :
À la main : $P_0 = 3$, $P_1 = 4$, $P_2 = \dfrac{16}{3} \approx 5{,}33$, $P_3 = \dfrac{64}{9} \approx 7{,}11$. La suite $(P_n)$ est géométrique de raison $\dfrac{4}{3} > 1$, et son premier terme est positif, donc $\lim\limits_{n \to +\infty} P_n = +\infty$. Le texte Longueur d'un arc de courbe raconte comment cette idée est liée à la question « quelle est la longueur de la côte de la Bretagne ? ».
Notons $T$ l'aire du triangle de départ. Un triangle équilatéral de côté $a$ a pour aire $\dfrac{\sqrt{3}}{4}\,a^2$, donc $T = \dfrac{\sqrt{3}}{4}$. Si on divise le côté par $3$, l'aire est divisée par $3^2 = 9$.
Un exemple à la main : de l'étape $0$ à l'étape $1$. On ajoute $3$ petits triangles, un sur chaque côté. Leur côté vaut $\dfrac{1}{3}$, donc chacun a pour aire $\dfrac{T}{9}$. L'aire ajoutée est $3 \times \dfrac{T}{9} = \dfrac{T}{3}$, et $A_1 = T + \dfrac{T}{3} = \dfrac{4}{3}\,T$.
Étape 1 : l'aire ajoutée entre l'étape $k$ et l'étape $k+1$. On ajoute un petit triangle sur chacun des $c_k = 3 \times 4^k$ côtés. Ces triangles ont pour côté $\ell_{k+1} = \dfrac{1}{3^{k+1}}$, donc chacun a pour aire $\dfrac{T}{9^{k+1}}$. L'aire ajoutée vaut
$$a_k = 3 \times 4^k \times \frac{T}{9^{k+1}} = \frac{3T}{9} \times \frac{4^k}{9^k}.$$Comme $\dfrac{3}{9} = \dfrac{1}{3}$ et $\dfrac{4^k}{9^k} = \left(\dfrac{4}{9}\right)^k$,
$$a_k = \frac{T}{3}\left(\frac{4}{9}\right)^k.$$Vérification avec l'exemple : $a_0 = \dfrac{T}{3}$.
Étape 2 : l'aire à l'étape $n$. L'aire $A_n$ est l'aire du triangle de départ plus toutes les aires ajoutées de l'étape $0$ à l'étape $n-1$ :
$$A_n = T + a_0 + a_1 + \cdots + a_{n-1}.$$La suite $(a_k)$ est géométrique, de premier terme $\dfrac{T}{3}$ et de raison $q = \dfrac{4}{9}$. D'après la formule de la somme des termes d'une suite géométrique,
$$a_0 + \cdots + a_{n-1} = \frac{T}{3} \times \frac{1 - q^n}{1 - q}.$$Comme $1 - q = \dfrac{5}{9}$, on a $\dfrac{T}{3} \times \dfrac{9}{5} = \dfrac{3T}{5}$, d'où la formule annoncée.
Étape 3 : la limite. Comme $0 < \dfrac{4}{9} < 1$, $\left(\dfrac{4}{9}\right)^n$ tend vers $0$. Par somme et produit de limites,
$$\lim_{n \to +\infty} A_n = T + \frac{3T}{5} = \frac{8}{5}\,T.$$Avec $T = \dfrac{\sqrt{3}}{4}$, cette limite vaut $\dfrac{8}{5} \times \dfrac{\sqrt{3}}{4} = \dfrac{2\sqrt{3}}{5} \approx 0{,}69$.
Le flocon de Koch a donc un périmètre infini qui entoure une aire finie, égale à $1{,}6$ fois celle du triangle de départ. On peut d'ailleurs voir directement que le flocon reste borné : il ne sort jamais du disque qui passe par les trois sommets du triangle de départ.
C'est exactement le problème que le vivant doit résoudre, mais en trois dimensions : loger une surface d'échange immense dans un volume limité. Un poumon ou un intestin ne peuvent pas être très grands, mais ils doivent échanger beaucoup (de l'oxygène, des nutriments) avec le sang, et les échanges se font à travers une surface. Plus la surface est grande, plus les échanges sont importants.
Prenons un segment, un carré et un cube, et agrandissons-les d'un facteur $k$, c'est-à-dire en multipliant toutes les longueurs par $k$. Avec $k = 3$ :
- le segment agrandi est formé de $3 = 3^1$ copies du segment de départ ;
- le carré agrandi est formé de $9 = 3^2$ copies du carré de départ ;
- le cube agrandi est formé de $27 = 3^3$ copies du cube de départ.
L'exposant, $1$, $2$ ou $3$, est la dimension. Pour une forme autosimilaire, on définit donc sa dimension $D$ par la relation
$$N = k^D,$$où $N$ est le nombre de copies obtenues quand on agrandit la forme d'un facteur $k$.
Pour la courbe de Koch (un seul côté du flocon), agrandir d'un facteur $3$ donne $4$ copies de la courbe, puisque chaque côté est fait de $4$ morceaux trois fois plus petits. Il faut donc trouver $D$ tel que $3^D = 4$. Aucun entier ne convient : $3^1 = 3$ est trop petit et $3^2 = 9$ est trop grand. La dimension est entre $1$ et $2$.
Pour un nombre $D$ qui n'est pas entier, $3^D$ est défini par $3^D = \mathrm{e}^{D \ln 3}$. On résout alors :
- $3^D = 4$ équivaut à $\mathrm{e}^{D \ln 3} = 4$ ;
- en appliquant la fonction logarithme : $D \ln 3 = \ln 4$ ;
- comme $\ln 3 > 0$ : $D = \dfrac{\ln 4}{\ln 3} \approx 1{,}26$.
Plus généralement, $D = \dfrac{\ln N}{\ln k}$. La courbe de Koch est « plus qu'une ligne » (elle est si plissée qu'elle a une longueur infinie) mais « moins qu'une surface » (son aire est nulle). Pour le triangle de Sierpinski, agrandir d'un facteur $2$ donne $3$ copies, d'où $D = \dfrac{\ln 3}{\ln 2} \approx 1{,}58$.
Un objet réel n'est pas exactement autosimilaire : on ne peut pas compter des « copies ». On le mesure plutôt avec des règles de plus en plus petites. Voyons ce que cela donne sur la courbe de Koch, en partant d'un segment de longueur $1$.
- Avec une règle de longueur $\varepsilon = \dfrac{1}{3}$, on compte $N = 4$ pas.
- Avec $\varepsilon = \dfrac{1}{9}$, on compte $N = 16$ pas.
- Avec $\varepsilon = \dfrac{1}{3^n}$, on compte $N = 4^n$ pas.
Calculons le rapport $\dfrac{\ln N}{\ln(1/\varepsilon)}$ :
$$\frac{\ln 4^n}{\ln 3^n} = \frac{n \ln 4}{n \ln 3} = \frac{\ln 4}{\ln 3}.$$On retrouve la dimension. Pour un objet réel, on mesure $N$ pour plusieurs tailles de règle, on place les points de coordonnées $\ln(1/\varepsilon)$ et $\ln N$, et on constate qu'ils sont à peu près alignés : le coefficient directeur de la droite est la dimension. C'est ainsi que Mandelbrot, en 1967, a estimé à environ $1{,}25$ la dimension de la côte ouest de la Grande-Bretagne, à partir de mesures du physicien Lewis Fry Richardson.
En biologie, la même méthode s'applique à des photographies ou à des moulages : contour d'un neurone, ramification d'un arbre, surface des poumons. Pour une surface très plissée, on trouve une dimension comprise entre $2$ et $3$ : plus elle est proche de $3$, plus la surface « remplit » le volume qui la contient. Les valeurs publiées varient selon les méthodes de mesure, et il faut les citer avec prudence.
Construisons un arbre très simple.
- Génération $0$ : un tronc de longueur $1$.
- Passage d'une génération à la suivante : au bout de chaque branche, on fait partir deux nouvelles branches, l'une vers la gauche, l'autre vers la droite, toutes deux multipliées par un même rapport $r$ (avec $0 < r < 1$).
La figure permet de régler le rapport $r$, l'angle entre les branches et le nombre de générations.
Le nombre de branches. À chaque génération, le nombre de branches double : il y a $1$ tronc, puis $2$ branches, puis $4$, $8$… La génération $k$ compte $2^k$ branches. Le nombre total de branches, de la génération $0$ à la génération $n$, est la somme des termes d'une suite géométrique de raison $2$ :
$$1 + 2 + 4 + \cdots + 2^n = \frac{2^{n+1} - 1}{2 - 1},$$c'est-à-dire $2^{n+1} - 1$.
Avec $10$ générations : $2^{10} = 1\,024$ extrémités et $2^{11} - 1 = 2\,047$ branches en tout.
La longueur totale. Les branches de la génération $k$ mesurent $r^k$, et il y en a $2^k$ : leur longueur cumulée est $2^k r^k = (2r)^k$. La longueur totale $L_n$ de l'arbre jusqu'à la génération $n$ est donc la somme des termes d'une suite géométrique de raison $2r$. Si $2r \neq 1$,
$$L_n = 1 + (2r) + \cdots + (2r)^n,$$c'est-à-dire
$$L_n = \frac{1 - (2r)^{n+1}}{1 - 2r}.$$- Si $r < \dfrac{1}{2}$, alors $0 < 2r < 1$, donc $(2r)^{n+1}$ tend vers $0$ et $L_n$ tend vers $\dfrac{1}{1 - 2r}$ : la longueur totale reste finie.
- Si $r > \dfrac{1}{2}$, alors $2r > 1$, donc $(2r)^{n+1}$ tend vers $+\infty$ et $L_n$ aussi. Si $r = \dfrac{1}{2}$, chaque génération ajoute une longueur $1$, donc $L_n = n + 1$ tend aussi vers $+\infty$.
Pourtant, l'arbre reste dans un disque. Pour aller du pied du tronc à n'importe quelle extrémité, on parcourt une branche de chaque génération, de longueurs $1$, $r$, $r^2$… La distance parcourue est au plus
$$1 + r + \cdots + r^n = \frac{1 - r^{n+1}}{1 - r}.$$Comme $r^{n+1} > 0$, ce nombre est strictement inférieur à $\dfrac{1}{1 - r}$.
Tout l'arbre tient donc dans le disque de centre le pied du tronc et de rayon $\dfrac{1}{1 - r}$. Avec $r > \dfrac{1}{2}$, on retrouve la situation du flocon de Koch : une longueur aussi grande qu'on veut dans une région bornée. C'est ce que fait un réseau de vaisseaux sanguins, qui doit atteindre chaque cellule du corps.
Un arbre réel ne suit pas une règle aussi régulière : les branches ne se divisent pas toujours en deux, les angles et les rapports varient. Mais on retrouve l'idée d'une même règle répétée à plusieurs échelles : le tronc porte des branches, qui portent des rameaux, qui portent des brindilles. Une règle d'observation, attribuée à Léonard de Vinci, dit que lorsqu'une branche de diamètre $d_0$ se divise en deux branches de diamètres $d_1$ et $d_2$, on a à peu près
$$d_0^{\,2} = d_1^{\,2} + d_2^{\,2}.$$Autrement dit, la somme des aires des sections est conservée : la sève qui monte dans le tronc se répartit dans les branches. On verra plus loin que, pour les vaisseaux sanguins, l'exposant n'est plus $2$ mais $3$.
L'air entre par la trachée, qui se divise en deux bronches, une pour chaque poumon. Chaque bronche se divise à nouveau en deux, et ainsi de suite. Dans le modèle du physiologiste suisse Ewald Weibel (1963), on compte $23$ générations de divisions entre la trachée (génération $0$) et les plus petites ramifications, qui se terminent par des sacs d'air minuscules, les alvéoles pulmonaires. C'est à travers la paroi des alvéoles que l'oxygène passe dans le sang.
Avec le calcul précédent, $23$ divisions en deux donnent $2^{23} = 8\,388\,608$ ramifications terminales, soit plus de $8$ millions, et $2^{24} - 1$, c'est-à-dire près de $17$ millions de conduits en tout. Le diamètre diminue d'une génération à la suivante : dans les premières générations, il est multiplié environ par $0{,}8$.
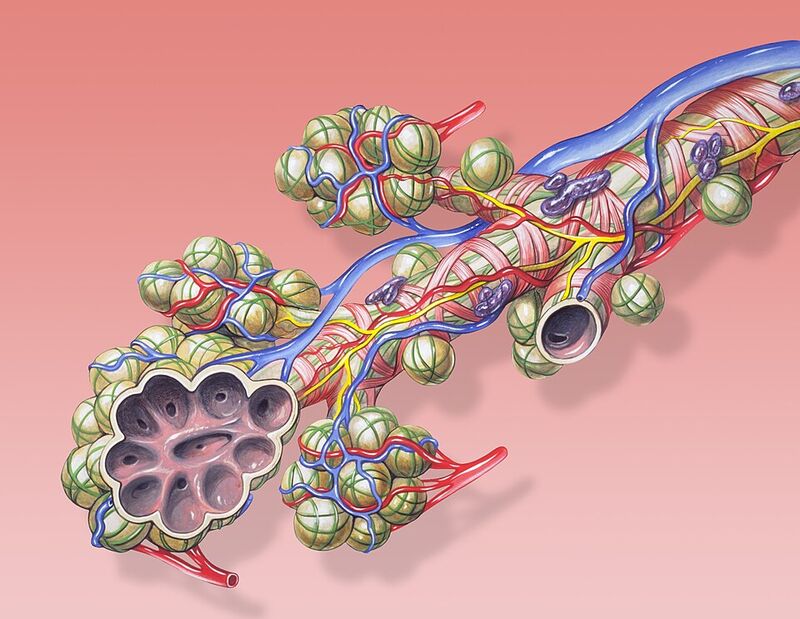
Une étude de 2004 a compté en moyenne environ $480$ millions d'alvéoles dans les deux poumons d'un adulte. Assimilons chaque alvéole à une sphère de diamètre $0{,}2$ mm, donc de rayon $0{,}1$ mm.
- Surface d'une alvéole : $4\pi \times 0{,}1^2 \approx 0{,}126$ mm².
- Surface de toutes les alvéoles : $0{,}126 \times 4{,}8 \times 10^8 \approx 6 \times 10^7$ mm², soit environ $60$ m² (car $1$ m² $= 10^6$ mm²).
- Volume d'une alvéole : $\dfrac{4}{3}\pi \times 0{,}1^3 \approx 0{,}004\,2$ mm³.
- Volume de toutes les alvéoles : $0{,}004\,2 \times 4{,}8 \times 10^8 \approx 2 \times 10^6$ mm³, soit environ $2$ litres (car $1$ L $= 10^6$ mm³).
Environ $60$ m², la surface d'un appartement, logés dans $2$ litres. Ce calcul grossier donne le bon ordre de grandeur : les mesures donnent plusieurs dizaines de mètres carrés.
Comparons avec un seul grand sac de $2$ litres. Une sphère de volume $2$ L $= 2\,000$ cm³ a un rayon $R$ tel que $\dfrac{4}{3}\pi R^3 = 2\,000$, soit $R \approx 7{,}8$ cm, et une surface $4\pi R^2 \approx 770$ cm², moins d'un dixième de mètre carré. Les alvéoles offrent environ $780$ fois plus de surface. D'où vient ce nombre ?
Étape 1. Soit une sphère de rayon $R$. On répartit le même volume dans $n$ sphères égales de rayon $\rho$. L'égalité des volumes s'écrit
$$n \times \frac{4}{3}\pi \rho^3 = \frac{4}{3}\pi R^3,$$donc $\rho^3 = \dfrac{R^3}{n}$.
Étape 2. Notons $c$ le nombre positif tel que $c^3 = n$ (on l'appelle la racine cubique de $n$). Alors $\rho^3 = \left(\dfrac{R}{c}\right)^3$, donc $\rho = \dfrac{R}{c}$.
Étape 3. La surface totale des $n$ petites sphères vaut
$$n \times 4\pi \rho^2 = c^3 \times \frac{4\pi R^2}{c^2} = c \times 4\pi R^2.$$La surface est multipliée par $c$.
Pour $n = 480$ millions, $c \approx 783$, car $783^3 \approx 4{,}8 \times 10^8$. Plus on découpe finement, plus la surface augmente, sans limite : c'est la même idée que dans le flocon de Koch. Mais il faut aussi amener l'air jusqu'à chacune de ces millions de petites sphères : c'est le rôle de l'arbre bronchique, un réseau de conduits qui se divisent en deux à chaque génération.
Le sang part du cœur par l'aorte, un tuyau d'environ $2{,}5$ cm de diamètre. Les artères se divisent, encore et encore, jusqu'aux capillaires, des vaisseaux de quelques micromètres de diamètre, assez fins pour qu'un globule rouge y passe à peine. C'est à travers la paroi des capillaires que l'oxygène et les nutriments passent dans les cellules. Presque aucune cellule du corps n'est à plus de quelques dixièmes de millimètre d'un capillaire.
Comment choisir le rayon des vaisseaux à chaque division ? En 1926, le physiologiste américain Cecil Murray propose une réponse par un calcul d'optimisation.
Un vaisseau de longueur $L$ et de rayon $r$ transporte un débit de sang $Q$ (un volume par seconde). Faire circuler le sang a deux coûts en énergie pour l'organisme.
- Pousser le sang. Plus le tuyau est fin, plus il faut pousser fort. Une loi de physique (la loi de Poiseuille), que l'on admet, montre que ce coût est de la forme $\dfrac{A}{r^4}$, où $A$ est un nombre positif proportionnel à $Q^2$ : $A = a\,Q^2$.
- Entretenir le sang. Le sang contenu dans le vaisseau doit être fabriqué et entretenu. Ce coût est proportionnel au volume du vaisseau $\pi r^2 L$ : il est de la forme $B r^2$, où $B$ est un nombre positif.
Un vaisseau trop fin coûte cher à cause du premier terme, un vaisseau trop large à cause du second. On cherche le rayon qui rend minimal le coût total
$$f(r) = \frac{A}{r^4} + B r^2, \qquad r > 0.$$Étape 1 : la dérivée. La dérivée de $\dfrac{1}{r^4} = r^{-4}$ est $-4r^{-5} = -\dfrac{4}{r^5}$. Donc
$$f'(r) = -\frac{4A}{r^5} + 2Br = \frac{2Br^6 - 4A}{r^5}.$$Étape 2 : le signe. Comme $r^5 > 0$, $f'(r)$ a le signe de $2Br^6 - 4A$. Or $2Br^6 - 4A > 0$ équivaut à $r^6 > \dfrac{2A}{B}$. Notons $r^*$ le nombre positif tel que $(r^*)^6 = \dfrac{2A}{B}$. La fonction $f$ est décroissante sur $]0\,;r^*]$ et croissante sur $[r^*\,;+\infty[$ : elle atteint son minimum en $r^*$.
Étape 3 : le lien avec le débit. Comme $A = a\,Q^2$, on a $(r^*)^6 = \dfrac{2a}{B}\,Q^2$. En notant $K$ le nombre positif tel que $K^2 = \dfrac{2a}{B}$, on obtient $\left((r^*)^3\right)^2 = (K Q)^2$, et comme tout est positif,
$$(r^*)^3 = K\,Q.$$La loi de Murray. Quand un vaisseau de rayon $r_0$ se divise en deux vaisseaux de rayons $r_1$ et $r_2$, le sang qui arrive repart dans les deux branches : $Q_0 = Q_1 + Q_2$. Si chaque vaisseau a son rayon optimal, $r^3 = KQ$ pour chacun, donc
$$r_0^{\,3} = r_1^{\,3} + r_2^{\,3}.$$C'est la loi de Murray : l'exposant est $3$, et non $2$ comme dans la règle de Léonard de Vinci pour les arbres. Les mesures sur les artères des mammifères la vérifient assez bien, sauf dans les plus grosses artères, où le sang circule par à-coups à chaque battement du cœur.
Supposons que chaque vaisseau se divise en deux vaisseaux identiques. La loi de Murray donne $r_0^{\,3} = 2\,r_1^{\,3}$, soit $r_1^{\,3} = \dfrac{r_0^{\,3}}{2}$. Notons $q$ le nombre tel que $q^3 = \dfrac{1}{2}$ : $q \approx 0{,}794$. Alors $r_1 = q\,r_0$ : à chaque division, le rayon est multiplié par $q$. Le rayon à la génération $n$ est donc la suite géométrique
$$r_n = r_0\,q^n.$$Prenons $r_0 = 1{,}25$ cm pour l'aorte et un rayon de $4$ micromètres pour un capillaire, c'est-à-dire $0{,}000\,4$ cm. On cherche $n$ tel que $r_0\,q^n = 0{,}000\,4$.
- En divisant par $r_0$ : $q^n = \dfrac{0{,}000\,4}{1{,}25} = \dfrac{1}{3\,125}$.
- En appliquant le logarithme : $n \ln q = -\ln 3\,125$.
- Comme $q^3 = \dfrac{1}{2}$, on a $3 \ln q = -\ln 2$, donc $\ln q = -\dfrac{\ln 2}{3}$.
- Finalement $n = \dfrac{3 \ln 3\,125}{\ln 2} \approx 34{,}8$.
Il suffit d'environ $35$ générations de divisions pour passer de l'aorte aux capillaires. Avec $35$ divisions en deux, on obtient $2^{35} \approx 3{,}4 \times 10^{10}$ capillaires, plusieurs dizaines de milliards. Les estimations réelles du nombre de capillaires sont du même ordre de grandeur, ce qui est remarquable pour un modèle aussi simple : le vrai réseau n'est ni régulier ni symétrique.
À la génération $n$, il y a $2^n$ vaisseaux de rayon $r_n$. L'aire totale de leurs sections vaut
$$S_n = 2^n \times \pi r_n^{\,2} = \pi r_0^{\,2} \times (2q^2)^n.$$Or $(2q^2)^3 = 8\,q^6 = 8 \times \dfrac{1}{4} = 2$, donc $2q^2 > 1$ (environ $1{,}26$). La suite $(S_n)$ est géométrique de raison supérieure à $1$ : elle tend vers $+\infty$. Comme tout le sang passe par chaque génération, la vitesse du sang est le débit divisé par la section totale : $v_n = \dfrac{Q_0}{S_n}$, qui tend vers $0$.
Le sang file dans l'aorte, mais avance très lentement dans les capillaires. C'est justement là qu'il doit être lent, pour laisser le temps aux échanges avec les cellules.
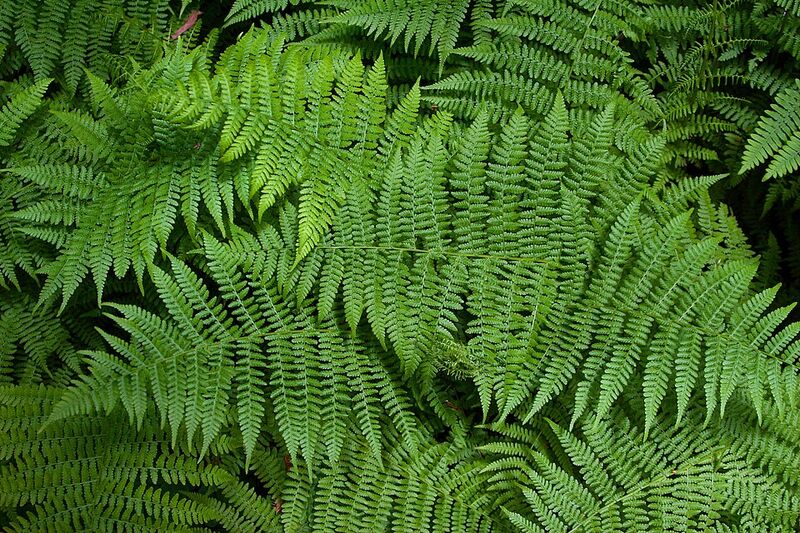
Une feuille de fougère, appelée fronde, porte de chaque côté des folioles qui ont presque la même forme qu'elle, en plus petit. Ces folioles sont souvent découpées à leur tour. On compte en général deux ou trois niveaux de répétition : c'est une fractale, mais seulement sur quelques échelles. En 1988, le mathématicien Michael Barnsley a montré qu'on peut dessiner une fougère très réaliste en répétant au hasard quatre transformations géométriques simples (voir le jeu du chaos dans le texte sur le triangle de Sierpinski).
Le chou romanesco est autosimilaire sur quatre ou cinq niveaux : chaque pointe est un petit chou en spirale. De plus, ces pointes sont disposées selon deux familles de spirales, l'une tournant à gauche et l'autre à droite. On en compte souvent deux nombres consécutifs de la suite de Fibonacci, comme $8$ et $13$. On retrouve ces nombres dans les cœurs de tournesol et les pommes de pin.
La suite de Fibonacci est définie par $u_0 = 1$, $u_1 = 1$ et $u_{n+2} = u_{n+1} + u_n$ : $1,\ 1,\ 2,\ 3,\ 5,\ 8,\ 13,\ 21,\ 34\ldots$ Calculons les quotients de deux termes consécutifs :
| $\dfrac{u_{n+1}}{u_n}$ | $\frac{2}{1}$ | $\frac{3}{2}$ | $\frac{5}{3}$ | $\frac{8}{5}$ | $\frac{13}{8}$ | $\frac{21}{13}$ | $\frac{34}{21}$ |
|---|---|---|---|---|---|---|---|
| valeur | $2$ | $1{,}5$ | $1{,}667$ | $1{,}6$ | $1{,}625$ | $1{,}615$ | $1{,}619$ |
Les quotients semblent converger. Admettons-le, et notons $\ell$ leur limite, qui est positive. En divisant la relation de récurrence par $u_{n+1}$, on obtient
$$\frac{u_{n+2}}{u_{n+1}} = 1 + \frac{u_n}{u_{n+1}}.$$En passant à la limite, $\ell = 1 + \dfrac{1}{\ell}$. On multiplie par $\ell$ : $\ell^2 - \ell - 1 = 0$. Le discriminant vaut $\Delta = 1 + 4 = 5$, et la seule solution positive est
$$\ell = \frac{1 + \sqrt{5}}{2} \approx 1{,}618.$$C'est le nombre d'or, noté $\varphi$. Chez beaucoup de plantes, deux feuilles (ou deux fleurons) qui apparaissent l'une après l'autre sont séparées par un angle proche de $360° \times \left(1 - \dfrac{1}{\varphi}\right) \approx 137{,}5°$, appelé angle d'or. Cette disposition répartit les feuilles sans qu'elles se cachent les unes les autres, et elle fait apparaître les spirales comptées par des nombres de Fibonacci.
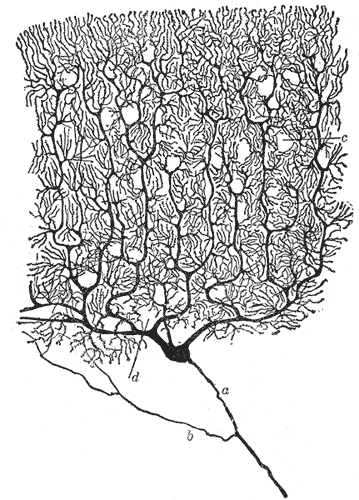
Un neurone reçoit les signaux des autres neurones par ses dendrites, des prolongements qui se ramifient comme un arbre. Plus l'arbre est ramifié, plus le neurone peut recevoir de connexions : une cellule de Purkinje du cervelet en reçoit des dizaines de milliers. Les neurobiologistes mesurent la dimension fractale des dendrites, par la méthode des règles de plus en plus petites, pour comparer des types de neurones ou repérer des modifications liées à l'âge ou à des maladies. Le fonctionnement d'un neurone et son modèle mathématique sont présentés dans le texte Neurone biologique, neurone mathématique.
La paroi de l'intestin grêle, où les nutriments passent dans le sang, est plissée à trois échelles :
- des plis de l'ordre du centimètre ;
- sur ces plis, des villosités, petites excroissances de l'ordre du millimètre ;
- sur les cellules des villosités, des microvillosités, de l'ordre du micromètre.
Chaque niveau multiplie la surface. Attention aux chiffres : les manuels ont longtemps annoncé environ $200$ m² pour la surface de l'intestin, souvent comparée à un court de tennis. Une étude de 2014 a refait la mesure et trouvé environ $30$ m² pour tout le tube digestif. C'est un bon exemple de chiffre à vérifier avant de le citer.
Comparons des animaux de même forme mais de tailles différentes, et notons $L$ leur taille. Leur volume, donc leur masse $M$, est proportionnel à $L^3$, et leur surface à $L^2$. Exprimons la surface en fonction de la masse.
- $M = k L^3$ (avec $k$ positif), donc $L^3 = \dfrac{M}{k}$.
- La surface vaut $S = k' L^2$, donc $S^3 = k'^3 L^6 = k'^3 \left(\dfrac{M}{k}\right)^2$.
- La surface est donc proportionnelle à la masse « puissance $\dfrac{2}{3}$ », c'est-à-dire au nombre dont le cube vaut $M^2$.
Un animal qui fabrique de la chaleur et doit l'évacuer, ou qui doit absorber de l'oxygène par sa surface, devrait donc avoir une dépense d'énergie proportionnelle à $M^{2/3}$.
En 1932, le biologiste Max Kleiber compare la dépense d'énergie au repos (le métabolisme de base) d'animaux de masses très différentes. Il trouve que le métabolisme $B$ est plutôt proportionnel à $M^{3/4}$ :
$$B = B_0\,M^{3/4},$$avec, chez les mammifères, $B_0 \approx 3{,}4$ lorsque $B$ est en watts et $M$ en kilogrammes. La puissance $M^{3/4}$ se définit comme les puissances non entières vues plus haut : $M^{3/4} = \mathrm{e}^{\frac{3}{4} \ln M}$.
Des calculs avec cette loi.
- Un humain de $70$ kg : $70^{3/4} = \mathrm{e}^{0{,}75 \ln 70} \approx 24{,}2$, donc $B \approx 3{,}4 \times 24{,}2 \approx 82$ W, ce qui correspond bien à la dépense au repos d'un adulte, environ $1\,700$ kilocalories par jour.
- Une souris de $20$ g $= 0{,}02$ kg : $B \approx 3{,}4 \times 0{,}053 \approx 0{,}18$ W.
- Un éléphant de $4$ tonnes : $B \approx 3{,}4 \times 503 \approx 1\,700$ W.
Rapportons à la masse : la souris dépense environ $\dfrac{0{,}18}{0{,}02} = 9$ W par kilogramme, l'humain $\dfrac{82}{70} \approx 1{,}2$ W/kg, l'éléphant $\dfrac{1\,700}{4\,000} \approx 0{,}43$ W/kg. En effet, $\dfrac{B}{M} = B_0\,M^{-1/4}$ : cette fonction de $M$ est décroissante. Un gramme de souris brûle environ vingt fois plus d'énergie qu'un gramme d'éléphant ; son cœur bat aussi beaucoup plus vite.
Comment Kleiber a-t-il trouvé l'exposant ? En prenant le logarithme de chaque côté de $B = B_0\,M^{3/4}$ :
$$\ln B = \ln B_0 + \frac{3}{4} \ln M.$$Si l'on pose $X = \ln M$ et $Y = \ln B$, on obtient $Y = \dfrac{3}{4}X + \ln B_0$ : l'équation d'une droite. Quand on place chaque espèce dans un repère avec $\ln M$ en abscisse et $\ln B$ en ordonnée, les points s'alignent, de la souris à l'éléphant, et le coefficient directeur de la droite est l'exposant. C'est la même méthode que pour mesurer une dimension fractale.
En 1997, trois chercheurs américains, Geoffrey West, James Brown et Brian Enquist, ont proposé une explication fondée sur les fractales. L'énergie est distribuée à toutes les cellules par des réseaux qui se ramifient, comme les vaisseaux sanguins, et ces réseaux sont construits pour remplir tout le volume du corps en dépensant le moins d'énergie possible. Leur modèle prédit l'exposant $\dfrac{3}{4}$. Cette explication est encore discutée : certains chercheurs trouvent un exposant plus proche de $\dfrac{2}{3}$ pour certains groupes d'animaux. C'est une question de recherche ouverte.
- Pas d'infini dans le vivant. Une fractale mathématique a des détails à toutes les échelles. Un poumon s'arrête après $23$ générations, une fougère après deux ou trois niveaux. On parle de fractale sur un intervalle d'échelles.
- Pas d'autosimilarité exacte. Les branches réelles ne sont pas toutes identiques : les modèles décrivent des moyennes.
- Des mesures fragiles. La dimension fractale d'un objet réel dépend de la méthode et des échelles choisies. Deux études peuvent donner des valeurs différentes pour le même organe.
- Des chiffres à vérifier. L'exemple de la surface de l'intestin montre qu'un chiffre très répété peut être faux : il faut toujours remonter à la source.
Ce texte n'est pas un Grand Oral. Il rassemble des connaissances dans lesquelles chacun peut choisir une direction, la creuser et formuler sa propre question. Quelques directions possibles :
- Mathématiques : le périmètre et l'aire du flocon de Koch ; la dimension fractale et le logarithme ; la longueur d'un arbre et la somme d'une suite géométrique ; le rayon optimal d'un vaisseau ; la limite des quotients de Fibonacci ; la droite obtenue en passant au logarithme.
- SVT : les surfaces d'échange (poumons, intestin, capillaires) ; la circulation sanguine ; la croissance et la forme des végétaux ; le métabolisme et la taille des animaux.
Le jury peut interroger sur les chapitres de spécialité mobilisés. Avec ce thème, il est utile de connaître parfaitement : les suites géométriques, la somme de leurs termes et leur limite selon la raison ; les opérations sur les limites ; les suites définies par récurrence et le passage à la limite dans une relation de récurrence ; la fonction logarithme et ses propriétés algébriques ; la fonction exponentielle ; la dérivation, le signe de la dérivée et les variations d'une fonction.
Pour réviser ces chapitres, l'application Maths FlashBac reprend tout le cours de spécialité en cartes.
- Fractale, flocon de Koch, loi de Murray et loi de Kleiber (Wikipédia).
- B. Mandelbrot, Les objets fractals : forme, hasard et dimension, Flammarion, 1975.
- Sur ce site : Le triangle de Sierpinski, Longueur d'un arc de courbe et Neurone biologique, neurone mathématique.